


-01-
引言
在过去的十几年中,T细胞免疫检查点(ICP)的发现以及CTLA-4和PD-1/PD-L1单克隆抗体抑制剂的开发彻底改变了免疫肿瘤学领域。然而,由于肿瘤抵抗、缺乏肿瘤浸润淋巴细胞(TIL)和抑制性髓系细胞的存在,仅有10-30%的患者表现出长期,持久的反应,这些广泛使用的ICI的响应频率并不理想。此外,免疫相关不良事件(IRAE)的发生和获得性耐药也是巨大的障碍。因此,寻找新的与肿瘤微环境相关的其他免疫检查点称为解决这些问题的方向之一。
目前,负调节抗肿瘤免疫反应的抑制性ICP的列表正在增加。在这些新一代ICP中,淋巴细胞激活基因-3(LAG-3)已成为癌症治疗中最有前景和潜力的靶点之一。在目前进行的临床评估中,针对LAG-3的阻断性单抗和双抗多达22种。根据目前已有的临床结果,可以肯定的是,LAG-3与PD-1在促进癌细胞免疫逃逸方面表现出显著的协同作用。由于LAG3与PD-1在机制上的互补性,LAG3联合PD-1已成为重要的肿瘤免疫治疗策略。
一、LAG-3的分子特性
LAG-3是一种Ⅰ型跨膜蛋白,具有四个Ig样结构域(D1-D4)。LAG-3的D1由9条β-链组成,它们被称为A、B、C、C'、C”、D、E、F和G链。大约30个氨基酸的附加序列位于C和C'链之间,形成一个环,称为“额外环”。尽管序列相似性较低,但在人和小鼠LAG-3中都可以观察到这个环,据报道此环参与了LAG-3和主要组织相容性复合体II类(MHCII)之间的关联。此外,LAG-3高度糖基化,在D2-D4中存在多个N-糖基化位点。Galectin-3和肝窦内皮细胞凝集素(LSECtin)被认为与LAG-3聚糖存在相互作用。
LAG-3的D4和跨膜区之间的存在一个较长的氨基酸序列称为“连接肽”。基于小鼠模型,发现金属蛋白酶ADAM10和ADAM17可以在CP处裂解LAG-3,并以可溶性形式释放LAG-3胞外区域。因此,ADAM10和ADAM17可能通过调节细胞表面LAG-3的数量来调节LAG-3的抑制作用。人与小鼠CP的氨基酸序列同源性较低,因此人类LAG-3是否也能被这些金属蛋白酶裂解,还有待进一步研究。
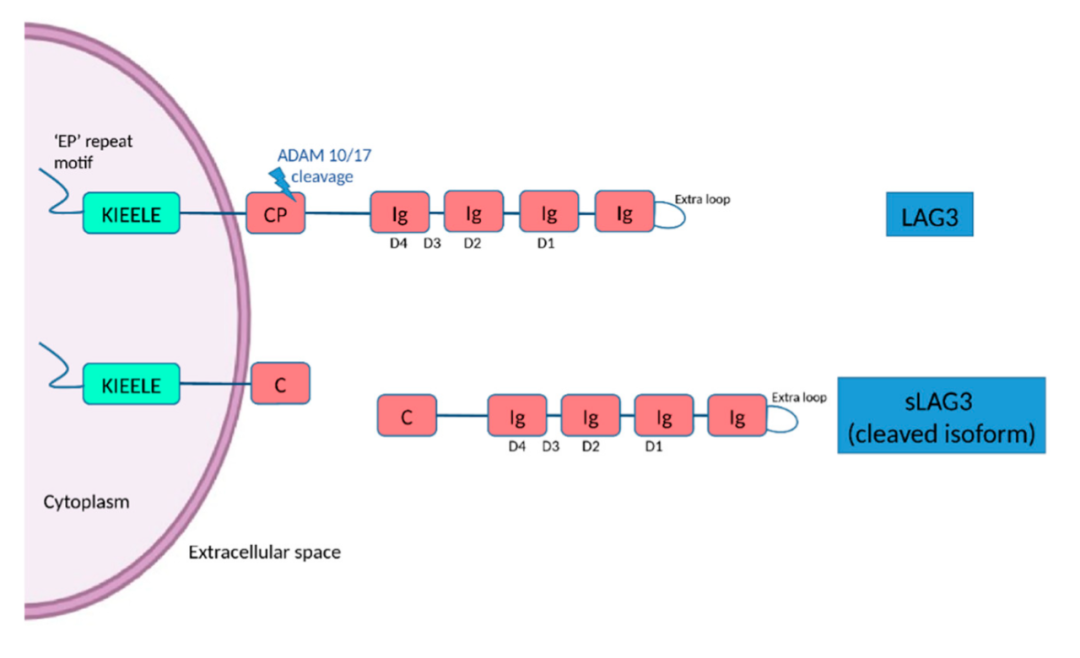
LAG-3的胞内区由大约60个氨基酸残基组成,缺乏典型的抑制基序,如免疫受体基于酪氨酸的抑制基序。然而,它包含几个氨基酸序列,这些氨基酸序列在不同的LAG-3物种中非常保守,而不与其他抑制性共受体共享。这些序列包括并列膜区的FSAL,中部区域的KIEELE,10-15个谷氨酸串联重复序列,以及在C末端区域的倾向但不限于的脯氨酸(EX-repeat)。LAG-3抑制T细胞活化需要细胞内区域的信号传递,它可以通过这些序列传递不同的抑制信号。
-03-
二、LAG-3的表达与配体
与PD-1和CTLA-4一样,LAG-3在原始T细胞上不表达,但在抗原刺激下可在CD4+和CD8+T细胞上诱导表达。LAG-3在具有抑制功能的CD4+T细胞亚群中也有表达。Foxp3+调节性T(Treg)细胞结构性地表达LAG-3。
LAG-3在CD3+CD4-CD8-T细胞、TCRαβCD8αα上皮内淋巴细胞、γδT细胞和NKT细胞上也有表达,据报道,其在活化NK细胞上的表达参与了对小鼠MHCI阴性靶细胞的杀伤作用。浆细胞样树突状细胞和活化B细胞也在其细胞表面表达LAG-3。然而,LAG-3在这些细胞中的功能作用仍然知之甚少。此外,据报道LAG-3在神经元上也有表达,并作为α-突触核蛋白纤维的受体。
LAG-3区分pMHCII的构象并选择性地与稳定的pMHCII结合。除了稳定的pMHCII外,还有其他几种分子被报道为LAG-3的可能配体。galectin-3和LSECtin已被证明与LAG-3上的聚糖相互作用。Galectin-3属于Galectin家族,是一种由多种肿瘤细胞和肿瘤间质细胞分泌的可溶性半乳糖结合凝集素。LSECtin是C型凝集素家族的一员,主要在肝脏中表达。
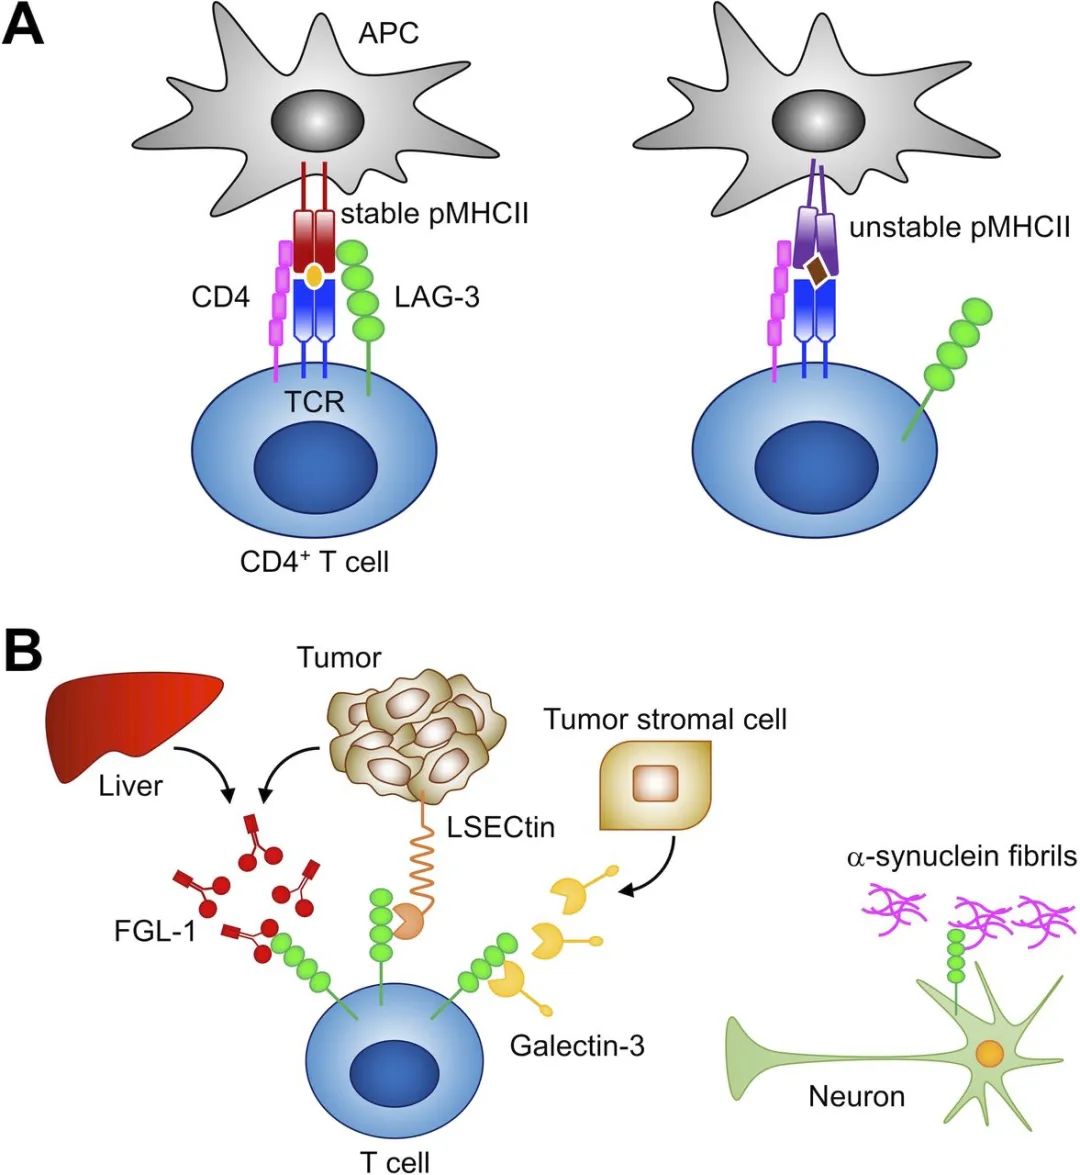
除了免疫抑制作用外,LAG-3似乎在神经系统中也有明显的作用。Mao等人报道LAG-3可以与α-突触核蛋白纤维结合,这与帕金森病的发病机制有关。α-突触核蛋白纤维与LAG-3的结合触发了α-突触核蛋白纤维的内吞作用、细胞间传递和神经毒性。
-04-
三、LAG-3靶向药物的临床开发全景
基于对LAG-3生物学和信号传导的理解,已开发出大量LAG-3靶向药物,包括抗LAG-3单克隆抗体、同时靶向LAG-3与PD-1或PD-L1(PD-1xLAG-3、PD-L1xLAG-3)或CTLA-4(CTLA-4xLAG-3)的双特异性抗体。
Relatlimab(原BMS-986016)
Relatlimab是一种针对人LAG-3的全人源IgG4同种型抗体,从表达人 免 疫 球 蛋 白基因的免疫转基因小鼠中分离。具有稳定铰链突变(S228P)的IgG4同种型抗体减弱Fcγ受体结合,消除了抗体依赖性细胞介导的细胞毒性(ADCC)的可能性。Relatlimab结合LAG-3的N端D1–D2结构域区域,阻断LAG-3与MHC II类(IC₅₀,0.67 nmol/L)和FGL1(IC₅₀,0.019 nmol/L)的相互作用。在同基因肿瘤模型中,单药LAG-3阻断活性极小(免疫原性纤维肉瘤Sa1N除外),但PD-1和LAG-3的共同阻断显示出显著的抗肿瘤活性。
在RELATIVITY-047研究中,先前未经治疗的晚期不可切除III/IV期皮肤黑色素瘤患者被随机分配接受nivolumab+安慰剂(480 mg每四周)或nivolumab+relatlimab FDC(480 mg/160 mg每四周),主要终点是盲法独立中央审查(BICR)根据实体瘤疗效评价标准(RECIST)V.1.1评估的无进展生存期(PFS)。中位随访13.2个月时,nivolumab+relatlimab FDC改善了PFS(10.1 vs 4.6个月,HR 0.75,95% CI 0.62至0.92),LAG-3表达有应答富集趋势(LAG-3 ≥1%时HR 0.75 vs LAG-3 <1%时0.78)。与RELATIVITY-020部分D类似,nivolumab+relatlimab FDC的3/4级TRAE发生率相对较低(18.9% vs 9.7%),治疗停药率为8.5%。额外约6个月中位随访的后续报告证实了上述PFS获益,并阐明nivolumab+relatlimab FDC相比nivolumab改善了ORR(43.1% vs 32.6%)。这些结果导致了nivolumab+relatlimab FDC获批用于该适应症,标志着首 个第三代检查点ICI的获批。
Fianlimab(原REGN3767)
Fianlimab是一种全人源抗LAG-3单克隆抗体,从免疫重组LAG-3(含人LAG-3胞外结构域和小鼠IgG2a Fc部分)的转基因VelocImmune小鼠脾细胞分离的杂交瘤中产生。Fianlimab在下铰链区含有多个氨基酸替换以减少Fcγ受体结合。Fianlimab有效阻断LAG-3与MHC II类之间的相互作用(EC₅₀,4.2–7.1 nmol/L),但fianlimab的表位特异性以及是否阻断其他推定的LAG-3配体(包括FGL-1)仍未知。与relatlimab类似,fianlimab主要在与抗PD-1联合时表现出显著的抗肿瘤疗效。
fianlimab的I期研究评估了fianlimab递增剂量(1、3、10或20 mg/kg每三周)单药以及与cemiplimab(3 mg/kg或350 mg每三周)联合在经治实体瘤患者中的安全性。后续队列扩展研究,评估了fianlimab 1600 mg每三周和cemiplimab 350 mg每三周在两组晚期NSCLC队列和四组晚期皮肤黑色素瘤队列中的应用。联合固定剂量cemiplimab+fianlimab在初治和经验性黑色素瘤的多个队列中产生了高ORR(队列6,ORR 62.5%;队列15,62.5%;队列16,55.6%;三个队列共98名患者中ORR 61.2%)。cemiplimab+fianlimab的安全性与nivolumab+relatlimab相似。cemiplimab+fianlimab的疗效与PD-L1表达相关(PD-L1 ≥1%时ORR 73.1% vs PD-L1 <1%时56.1%),但与LAG-3表达无关(LAG-3 ≥1%时63.6% vs LAG-3 <1%时57.1%)——这一观察与RELATIVITY-047中nivolumab+relatlimab的经验一致。值得注意的是,虽然cemiplimab+fianlimab在PD-1经验性患者中的疗效降低(队列7,ORR 13.3%),但在PD-1初治黑色素瘤队列中,高LDH(53%)和肝转移(40%)等不良预后亚组患者的缓解率高于预期。这些结果推动了评估cemiplimab+fianlimab联合方案在一线转移性NSCLC、高风险切除黑色素瘤和一线转移性黑色素瘤中的一系列III期试验。
Favezelimab(原MK-4280)
Favezelimab是一种LAG-3靶向全人源IgG4同种型抗体,可中断LAG-3与pMHCII之间的相互作用。与relatlimab和fianlimab不同,favezelimab的结合亲和力和详细配体相互作用数据尚未公开报道。
初始I期研究评估了favezelimab单药及与pembrolizumab联合在晚期实体瘤中的安全性,仅评估了有限数量的favezelimab剂量(7、21、70、210或700 mg/kg每三周)。药代动力学特征典型,呈线性清除,无异常毒性信号。观察到的疗效温和但与relatlimab相当——单药疗效极小(ORR 6%,疾病控制率17%),pembrolizumab+favezelimab联合疗效改善(ORR 17%,疾病控制率40%)。基于初始I期经验,选择每三周800 mg作为RP2D,并创建了包含favezelimab 800 mg和pembrolizumab 200 mg的共制剂。
一项III期试验,评估了pembrolizumab+favezelimab FDC是否比化疗(regorafenib或TAS-102)改善PD-L1 CPS ≥1且既往接受不超过两线氟尿嘧啶类化疗和BRAF(若BRAF突变)或EGFR(若KRAS野生型)靶向治疗进展患者的OS(KEYFORM-007)。遗憾的是,pembrolizumab+favezelimab FDC未能改善化疗的OS。
终止favezelimab临床开发计划的决定令人意外。虽然III期KEYFORM-007试验在>2L MSS CRC患者中的阴性结果和KEYNOTE-495/KeyImPaCT在晚期NSCLC中令人失望的结果对靶向LAG-3在这些特定适应症中的疗效提出了质疑,但强调LAG-3靶向重要性的有力生物学依据,以及MK-4280-003研究中看到的初步疗效,提示pembrolizumab+favezelimab在关键适应症中的潜力。该计划的终止凸显了在预测性生物标志物不明确的领域中开发第三代检查点的固有挑战。
Ieramilimab(原LAG525)
Ieramilimab是一种人源化IgG4抗体,含有S228铰链稳定突变,因此不结合Fcγ受体。Ieramilimab主要阻断LAG-3 D1结构域与FGL-1(IC₅₀,0.1 nmol/L)和pMHCII(纳摩尔亲和力)之间的相互作用。
在一项大型非随机II期研究中,在PD-1初治和PD-1复发/难治性NSCLC、黑色素瘤、肾细胞癌(RCC)、间皮瘤和三阴性乳腺癌(TNBC)中以RP2D剂量评估ieramilimab+spartalizumab。不出所料,PD-1初治患者的ORR更高,范围从4.8%(TNBC,每四周方案)到26.3%(RCC),而PD-1复发/难治性患者的ORR范围从0.0%(NSCLC)到9.1%(黑色素瘤)。ieramilimab+spartalizumab在黑色素瘤中的活性,无论PD-1初治(ORR 15.0%)还是PD-1复发/难治性(ORR 9.1%)场景,均低于其他PD-1/LAG-3组合。因此,无进一步开发计划。
Encelimab(原TSR-033)
Encelimab是一种人源化IgG4抗体,有效阻断LAG-3与pMHCII之间的相互作用,在T细胞活化试验中增加IL-2产生,并在人源化和同基因小鼠肿瘤模型中增加PD-1阻断的疗效。
encelimab随后在I期研究中作为单药以及与抗PD-1 dostarlimab联合在多个递增队列中评估。然而,虽然encelimab作为单药以及与dostarlimab和5-FU类化疗联合时具有可控的安全性特征,但有限的疗效阻碍了其进一步开发。
Miptenalimab(原BI 754111)
Miptenalimab是一种人源化IgG4抗体,以高亲和力靶向LAG-3-pMHCII相互作用(hLAG3 88.6–112皮摩尔亲和力)。在临床前体外和小鼠研究中,小鼠BI 754111(C9B7W)疗效极小,但C9B7W和小鼠抗PD-1(BI 905725)的组合与单用抗PD-1(BI 905725)相比显著改善了抗肿瘤控制。
抗PD-1 ezabenlimab(BI 754091)和抗LAG-3 miptenalimab(BI 754111)的联合方案在晚期实体瘤患者中进行了研究。ezabenlimab(240 mg每三周)和miptenalimab(600 mg每三周)的RP2D给药于285名患者,重症irAE发生率低。虽然ezabenlimab+miptenalimab耐受性良好,但观察到的疗效有限(队列A为11%,队列B为19%),并未提示LAG-3疗效超出抗PD-1单药预期之外的附加价值。
Tupastobart(原INCAGN02385)
Tupastobart是一种Fc工程化IgG1 κ抗体,以高亲和力竞争性干扰LAG-3与pMHCII的结合,导致活化的T细胞增强TCR信号传导和细胞因子产生。
一项I期研究评估了tupastobart单药在晚期实体瘤患者中的安全性。Tupastobart以五个剂量水平(25–750 mg每两周)作为单药递增,未联合抗PD-1,未观察到缓解,仅有27%的患者以疾病稳定为最佳应答。由于未观察到DLT,且未达到MTD,RP2D确定为每两周350 mg。tupastobart与抗PD-1 retifanlimab和抗TIM-3(INCAGN02390)联合的进一步探索正在复发或转移性头颈部鳞状细胞癌(R/M SCCHN)和特定晚期实体瘤中进行。
Tebotelimab(原MGD013):LAG-3xPD-1双特异性抗体
Tebotelimab是一种研究性的、含Fc的双亲和力重靶向(DART)双特异性抗体,由单独的PD-1和LAG-3靶向单克隆抗体创建,根据抗原刺激T细胞的结合、生物物理和受体阻断特征选择用于DART转化。在临床前研究中,tebotelimab以纳摩尔亲和力结合PD-1(KD,1.0 nM)和LAG-3(KD,0.1 nM),并阻断PD-1/PD-L1、PD-1/PD-L2和LAG-3/pMHCII相互作用及PD-1信号传导。功能测定表明,tebotelimab阻断产生的细胞因子分泌比单独使用抗PD-1(2547,或nivolumab等效物)或抗LAG-3更高。
tebotelimab的I期研究评估了该药单药以及与margetuximab(Her-2靶向单抗)联合使用,在多种晚期实体瘤中,包括ICI初治NSCLC和HNSCC(tebotelimab单药)以及HER2⁺乳腺和G/GEJ肿瘤(tebotelimab和margetuximab)。tebotelimab单药治疗(n=269)和tebotelimab+-margetuximab联合方案(n=84)。耐受性良好,≥3级TRAE发生率为22%。未确定MTD,RP2D为每两周600 mg。在剂量递增阶段,多种肿瘤类型中观察到客观缓解,包括弥漫性大B细胞淋巴瘤(ORR 50%)、上皮性卵巢癌(EOC,ORR 11%)和TNBC(ORR 6%)。
进一步研究探索了tebotelimab与抗B7-H3(enoblituzumab)和margetuximab的组合,分别在未经治疗的R/M SCCHN(CP-MGA271-06)和HER2⁺GC/GEJ(MAHOGANY)中进行。遗憾的是,前者研究安全数据的内部审查发现了一个安全性信号,两组中均有与出血事件相关的若干死亡事件,导致提前终止,无显著疗效信号。tebotelimab+margetuximab组合仍在II/III期MAHOGANY试验中积极研究。
-05-
结语
靶向抑制性协同受体PD-1和CTLA-4的检查点免疫疗法彻底改变了癌症治疗,而LAG-3作为新一代发现的抑制性检查点,有望成为肿瘤治疗中极具前景的靶点。然而,我们对LAG-3的理解仍然非常有限,许多基本问题仍然没有得到解答。LAG-3的信号转导机制尚不清楚,其配体也很复杂。LAG-3在多种细胞中表达,然而,LAG-3的功能以及LAG-3阻断剂在每种类型细胞中的作用尚未阐明。我们还需要研究LAG-3和其他共受体的功能差异、冗余和协同作用。通过更详细地阐明LAG-3的功能特性,我们才可以合理地设计LAG-3靶向治疗各种疾病,如癌症和自身免疫疾病。

 ×
 首页

 我要采购
 我要供应
 我要推广
 我要投稿

