


细胞中几乎所有向外出芽的过程——无论是膜修复、溶酶体分选还是中间体解体——都被认为依赖于膜重塑的 ESCRT-III 机制。
纤毛来源的细胞外囊泡(EV)介导细胞间通讯,并从纤毛中清除信号分子。Hedgehog 信号通路受体 Smoothened(SMO)通过泛素链被选择性地包装进纤毛 EV,但货物选择如何与纤毛膜上的 EV 出芽相偶联,目前仍不明确。
2026 年 11 月 12 日,加州大学旧金山分校祝明莉博士作为第一作者,在国际顶尖学术期刊 Science 上发表了题为:ESCRT-0 condensation and cargo clustering drive extracellular vesicle budding from cilia 的研究论文。
该研究分析了初级纤毛上细胞外囊泡的向外出芽,揭示了一种不依赖 ESCRT-III 的根本不同机制——泛素结合的 ESCRT-0 复合物在纤毛尖端形成蛋白凝聚体,并与信号受体 SMO 的泛素化分子共同凝聚,从而驱动细胞外囊泡的出芽。这些发现确立了凝聚与货物聚集作为不依赖 ESCRT-III 的膜向外出芽的替代机制。
祝明莉博士
论文第一作者祝明莉,2014 年本科毕业于厦门大学,2020 年博士毕业于清华大学,博士期间研究方向为迁移体,此后在加州大学旧金山分校开展博士后研究工作。
背向细胞质方向生长的膜芽,即反向拓扑膜芽(reverse-topology bud),支持溶酶体蛋白降解、膜修复、包膜病毒释放及细胞外囊泡(EV)分泌。大多数已知的反向拓扑出芽过程依赖 ESCRT(内体分选复合物)机制:ESCRT-0 捕获泛素化货物,转交给下游 ESCRT-III,后者负责膜变形与切割。
纤毛(Cilia)是毛发状突起,通过释放 EV 调控自身组成并在细胞间传递信号。泛素链标记 Hedgehog 信号受体 Smoothened(SMO),使其包装入纤毛 EV。然而,货物选择如何与纤毛膜上的 EV 出芽偶联尚不清楚。
ESCRT-0 具有多个泛素结合位点和内在无序区,这使其能够与膜结合的泛素链共凝聚,形成致密的液滴状凝聚体。利用小鼠肾脏细胞,研究团队探究了纤毛 EV 是利用这一特性,还是遵循经典的基于 ESCRT 的机制。通过遗传干扰和分泌实验,研究团队检测了 ESCRT 通路的各个阶段,并区分了货物装载与 EV 形成过程。借助单个 EV 测量、活细胞成像以及荧光与扫描电镜联用技术,研究团队明确了 ESCRT-0 的作用位点。随后,研究团队改变了 ESCRT-0 的凝聚状态,并独立控制 ESCRT-0 的招募与 SMO 的聚集,以检验它们在 EV 出芽中的各自作用。
纤毛 EV 的形成需要 ESCRT-0,而经典的上下游机制并非必需。敲除 ESCRT-0 的任何一个亚基都会显著减少 SMO 的分泌;同时,利用一种独立的纤毛膜标记物证实,ESCRT-0 是纤毛 EV 形成的必要条件,而非仅仅参与货物装载。相比之下,干扰 ESCRT-III 并未显著降低 EV 分泌,且主要的 ESCRT-III 亚基并未在出芽位点被检测到。
经典通路的这一反向逆转在释放的 EV 中同样很明显。ESCRT-0 在纤毛 EV 内部达到了凝聚体级别的浓度(>100 mg/ml),而它通常会被排除在经典 ESCRT 通路形成的囊泡之外。活细胞成像显示,随着 SMO 在同一组装体中逐渐富集,ESCRT-0 的凝聚点在纤毛尖端发生融合,去除泛素链会使 SMO 从纤毛尖端分散,这支持了 ESCRT-0 与泛素化的 SMO 共同凝聚的模型。相关光镜与扫描电镜将 ESCRT-0 凝聚体定位在新生芽体内,并且 ESCRT-0 与 SMO 被一同释放进入 EV。
删除一段促进 ESCRT-0 凝聚的内在无序区,会阻断 SMO 的分泌,但不会破坏 ESCRT-0 自身组装;用一段无关的促凝聚区替换它,则能恢复凝聚和分泌。仅将 ESCRT-0 招募到纤毛并不能触发 EV 出芽,但将其与光诱导的 SMO 聚集相结合,则足以触发 EV 释放,这表明 ESCRT-0 的凝聚与货物的聚集是协同作用的。
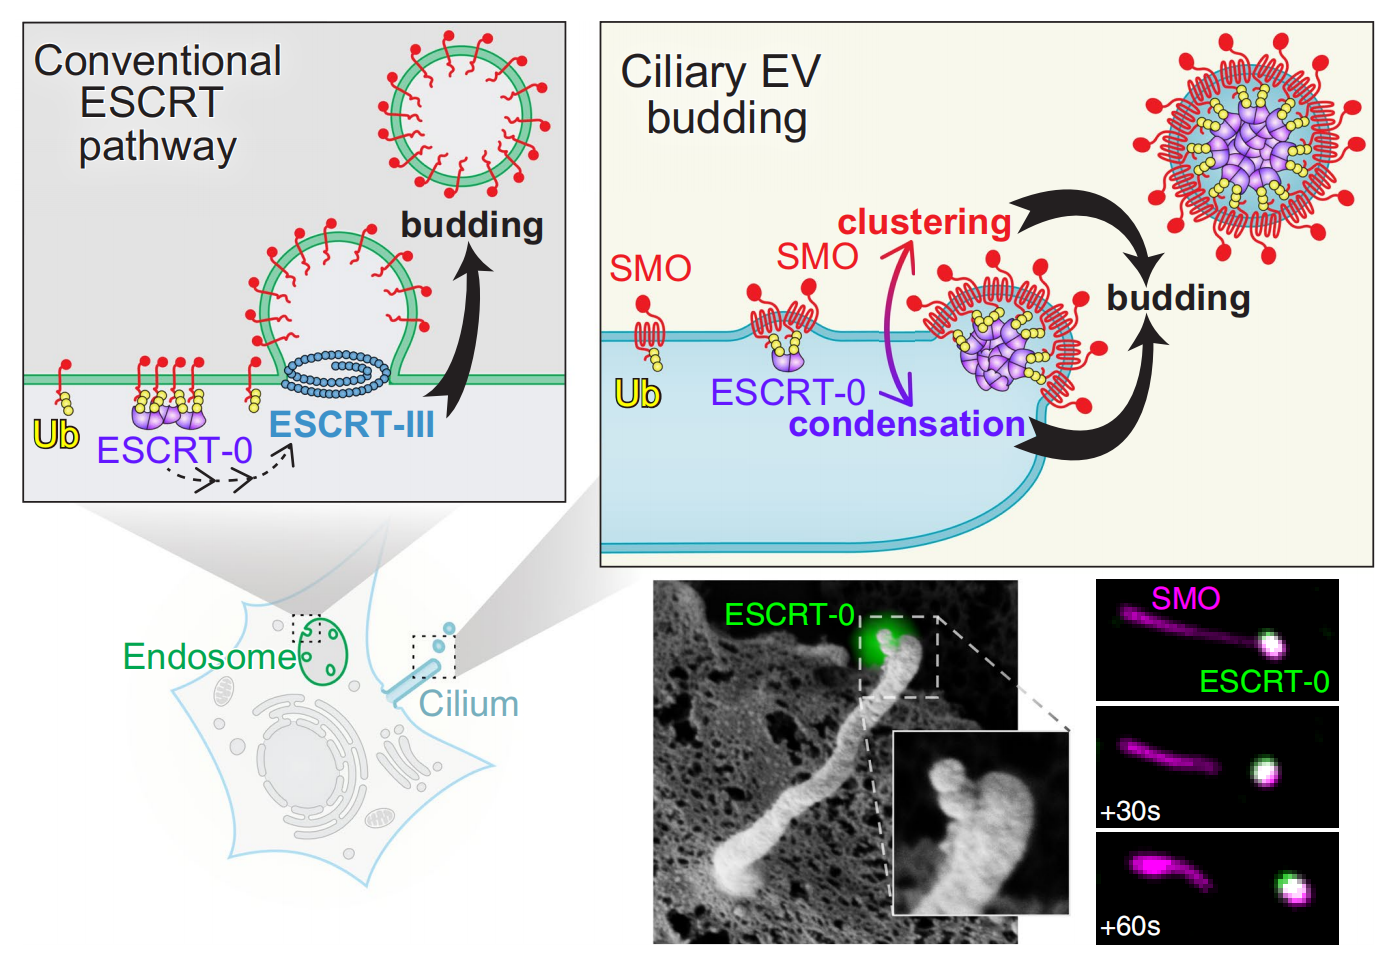
总的来说,该研究表明,纤毛 EV 采用一种根本上不同的反向拓扑出芽机制。在纤毛处,ESCRT-0 并非简单地将货物移交给一个独立的膜切割装置。相反,泛素化的 SMO 与 ESCRT-0 共同凝聚成一个自我强化的组装体,直接将货物选择与膜重塑偶联。在该模型中,ESCRT-0 凝聚体对纤毛膜的润湿作用与 SMO 聚集共同产生膜曲率并促进 EV 释放。因此,凝聚与货物聚集构成了一种不依赖 ESCRT-III 的、在纤毛膜上进行反向拓扑出芽的最小模块。

 ×
 首页

 我要采购
 我要供应
 我要推广
 我要投稿

