


10 月 5 日,2026 年诺贝尔生理学或医学奖授予美国斯坦福大学 Karl Deisseroth、德国柏林洪堡大学 Peter Hegemann 和德国维尔茨堡大学 Georg Nagel,表彰他们在光门控离子通道和光遗传学领域的开创性发现。几乎同期,《新英格兰医学杂志》(NEJM)刊发了 Deisseroth 撰写的社论,以及法国 GenSight Biologics 公司光遗传基因疗法管线 GS030 的名为 PIONEER 的 I 期临床数据。诺奖与临床研究的「双重奏」,标志着光遗传学正从基础科研工具迈向临床转化。
PIONEER 试验中 10 名终末期视网膜色素变性(RP)患者,单次玻璃体腔注射 AAV 载体将光敏蛋白 ChrimsonR 递送入视网膜神经节细胞,配合特制光刺激护目镜,6 人光敏感度达临床意义改善。
复明逻辑:从绿藻「光开关」
到存活「线路」
RP 是一组遗传性退行性视网膜疾病,全球超过 150 万人受累,已发现 100 余个致病基因。疾病进展中,视网膜光感受器进行性死亡,但下游双极细胞、神经节细胞在晚期仍大量存活。
干预逻辑由此而生:既然第一站光感受器坏了,能否让第二站(双极细胞)或第三站(神经节细胞)直接变成光感受器?
上世纪 90 年代起,Hegemann 与 Nagel 在一种没有眼睛却知道往光里游的单细胞绿藻——莱茵衣藻中寻找到光感受器,2002 年至 2003 年先后克隆出通道视紫红质 ChR1 和 ChR2。这是一种七次跨膜的光控阳离子通道,结合视黄醛发色团,光照瞬间开放,阳离子涌入、细胞去极化。
2005 年,Deisseroth 团队将 ChR2 导入神经元,实现毫秒级、基因靶向的光学控制,并将这一技术命名为「光遗传学」(optogenetics),论文发表于 Nature Neuroscience。此后二十年,光遗传学成为神经科学领域最强大的工具之一。
人体视紫红质与微生物通道视紫红质的工作逻辑截然不同。人眼视紫红质通过 G 蛋白偶联的级联反应,将单个光子事件放大为可感知的电信号,使人类视觉能在跨越数个数量级的光强范围内保持稳健。而微生物通道视紫红质是「光电开关」,光一照,离子通道直接开放,速度快、响应直接,但不具备放大和适应机制。
光遗传学复明的思路,正是把微生物通道视紫红质基因装到人体光感受器下游的细胞上。通过 AAV 载体把光敏蛋白基因送入双极细胞、神经节细胞,光信号便绕过死亡的感光细胞,沿原有视神经通路传向大脑。这个策略相比基因替代疗法有一项突出优势:不依赖具体的基因突变类型,面向的是「已无感光细胞可救」的晚期患者,属于一种「广谱兜底」疗法。
本次 NEJM 报道的 GS030 选择神经节细胞,面向最严重的晚期患者。
AAV 载体——
光遗传学疗法的「基因快递」
机制再好,基因送不进细胞就是空谈。GS030 的药物部分(研发代号 GS030-DP)是重组腺相关病毒(AAV)载体:衣壳为 AAV2.7m8,载体盒内为 ITR-CAG 启动子-ChrimsonR-tdTomato。
① 一道 「 内界膜 」 难题,
催生了 AAV2.7m8
眼科 AAV 基因治疗的经典给药路径是视网膜下注射,转导感光细胞和 RPE 效率高,但需要手术造成暂时性视网膜剥离,且药物难以扩散到全视网膜。
光遗传学的靶细胞是神经节细胞,紧贴玻璃体侧,最合理的给药方式是玻璃体腔注射——与常规抗 VEGF 注射相同,门诊即可完成。但玻璃体与视网膜之间隔着一层内界膜(ILM),这是 AAV 的天然屏障:野生型 AAV2 会被玻璃体中的硫酸乙酰肝素蛋白聚糖大量捕获,很难抵达视网膜。
AAV2.7m8 正是为翻越这道屏障而生。2013 年,Dalkara 等人在 Science Translational Medicine 报道了一种体内定向进化策略:在 AAV2 衣壳 R587 位点插入随机七肽,构建出百万级变体文库,注射进动物眼内,再从视网膜中回收成功「抵达」的衣壳基因、重新包装并再次注射,经过多轮「注射—回收—富集」,最终筛选出 7m8 变体。其表面展示的 LALGETTRP 短肽削弱了衣壳对玻璃体与内界膜上糖胺聚糖的非特异结合,使病毒得以穿透内界膜、在玻璃体腔扩散并高效转导神经节细胞,并在小鼠和非人灵长类视网膜各层得到验证。
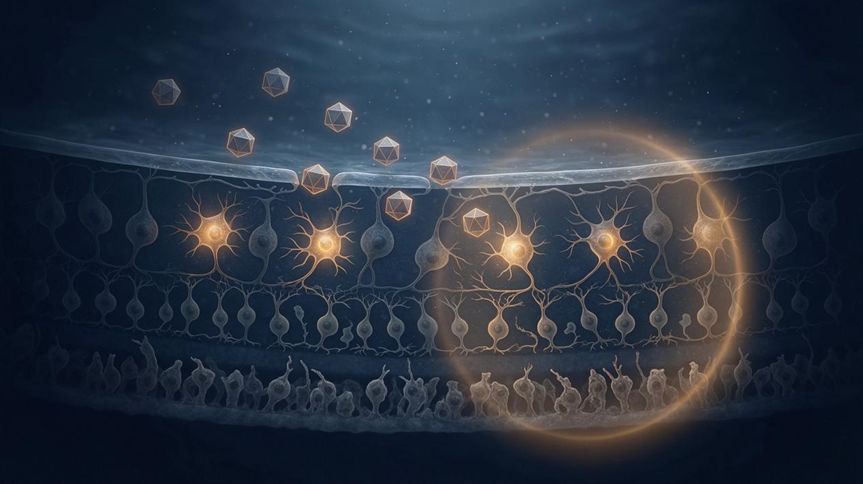
▲ AAV2.7m8 穿过内界膜的那一小段距离,决定了一种疗法能否从实验室走进门诊注射室。
一个短肽插入,把给药路径从手术室解放到门诊注射室。这是载体工程决定临床可行性的典型案例,也是 AAV2.7m8 被 GS030 选中的根本原因。
② 载体盒设计:
每个元件都有明确任务
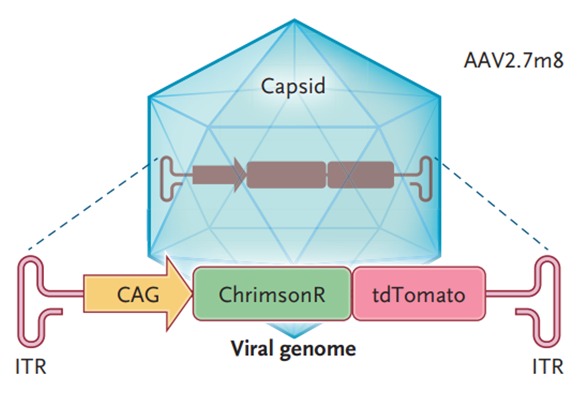
▲ GS030-DP 载体构建体
GS030-DP 的载体结构并不复杂,但每个元件都承担着特定功能:
ITR(反向末端重复)是 AAV 的顺式作用元件,负责外源基因组的包装与游离态维持。CAG 启动子由 CMV 增强子与 β-actin 启动子组成,保证 ChrimsonR 在神经节细胞中长期、高水平表达。ChrimsonR 是红移型通道视紫红质,祖先蛋白 Chrimson 来自绿藻 Chlamydomonas noctigama,经 K176R 点突变后光电流显著增强,峰值激活约 590 nm,对应琥珀色光。选择长波长有两层考量:红光/琥珀光的光毒性远低于蓝光;人眼残留的自然感光细胞对长波长不敏感,可减少背景「噪声」。tdTomato 是红色荧光蛋白,与 ChrimsonR 融合表达,使研究者能通过眼底荧光成像直接「看见」蛋白表达的位置与范围——后文「表达局限于旁中心凹环」这一关键发现,正是靠它观察到的。
③ 免疫原性与全身播散
玻璃体腔注射的免疫风险是审评与临床共同关注的焦点。PIONEER 的长期监测显示 10 例中有 9 例从注射后 3 个月起可检出针对 AAV2.7m8 衣壳、ChrimsonR 和 tdTomato 的抗体应答,其中 5 例抗衣壳中和抗体滴度升高至少 10 倍。酶联免疫斑点试验(ELISpot)显示,1 名高剂量组患者出现针对衣壳、ChrimsonR 和 tdTomato 的持续细胞免疫反应,提示高剂量与免疫风险之间需要平衡。
通过定量 PCR 监测血液、尿液和泪液,9 例患者的载体 DNA 在 3 个月时已检测不到,仅 1 例在注射后 6 个月出现一次血液阳性。70 起全身不良事件中,无一被判定与试验药物或注射操作相关。这组数据的含义在于:玻璃体腔注射的免疫原性与全身暴露总体可控,但中和抗体的普遍出现意味着 AAV 疗法「一次给药、难以重复」,而细胞免疫信号也提示剂量并非越高越好。
④ 载体不是单打独斗:
护目镜是疗法的另一半
微生物通道视紫红质没有级联放大与明暗适应,光敏感度比正常视网膜差数个数量级,无法直接响应普通环境光。因此 GS030 从设计之初就是一个药械组合:GS030-DP(基因治疗)加 GS030-MD(光刺激护目镜)。
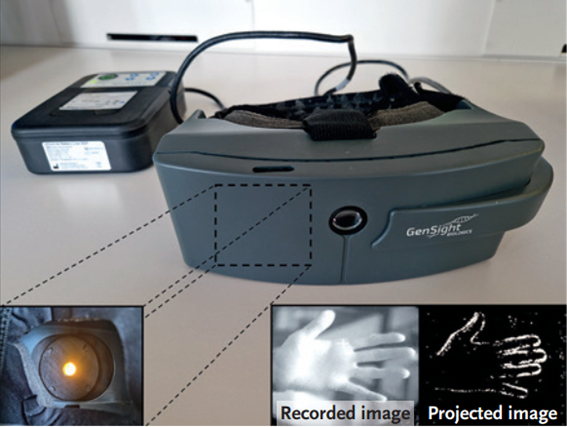
▲ GS030-MD 光刺激护目镜
护目镜前置摄像头实时捕捉自然场景,便携式处理器将亮度变化编码为 595 nm 琥珀光脉冲,再由护目镜内的投影仪投射到视网膜上——相当于把自然光「翻译」成 ChrimsonR 能听懂的语言。
训练同样不可忽视:训练。数据显示,有反应者平均接受 36.5 次护目镜训练,无反应者平均 15.3 次,训练内容只涉及佩戴适应。患者需要像学习一种新「感官语言」一样去解读这些信号。
临床数据:6/10 的「 有意义改善 」与清晰的天花板
PIONEER 是一项多中心、开放标签、剂量递增的 I 期研究(NCT03326336),纳入 10 例晚期非综合征性 RP 致盲患者,平均年龄 54.8 岁,基线视力为光感知、手动感知或无光感知,均处于疾病终末期。主要终点为安全性,次要终点涵盖光敏感度、视觉行为与皮层电生理。剂量方面:低、中、高三组分别为 5.0×10¹⁰、1.5×10¹¹、5.0×10¹¹载体基因组(vg)/眼,每例患者单眼、单次注射。
安全性方面,10 名参与者中 9 名共发生 34 起眼部不良事件,其中 23 起轻度和 10 起中度。严重事件为注射后一过性视网膜中央动脉阻塞(黑矇),滴用 Iopidine 后数分钟缓解。全身不良事件 70 起(39 轻、25 中、6 重),无一与药物或注射相关,其中 3 起轻度与护目镜相关。眼压与光学相干断层扫描(OCT)指标均在生理范围。
有效性方面,10 名参与者中 7 名治疗后光敏感度增加,增加倍数为 2.0 至 62.3 倍,其中 6 名达到临床意义改善(全视野刺激阈值 FST 降低至少 0.6 log 单位,即光敏感度增加约 4 倍);3 名参与者光敏感度无变化或下降。在完成笔记本、订书钉盒和条定向测试的 8 名参与者中,4 名表现出正向行为变化,被认为有应答。3 名有应答者自发报告通过护目镜感知物体时出现特征性「振动」,这种感知在无应答参与者和使用同一设备的视力正常对照中均不存在。
脑电图(EEG)记录为皮层水平的光遗传学信号传递提供了佐证。在睁眼检测杯子时,EEG 解码准确性平均增加 13.1 个百分点,稳态视觉诱发电位(SSVEP)测试中,EEG 解码准确性增加 7.6 个百分点。SSVEP 解码准确性增益与行为准确性变化相关,提示光遗传学诱发的视觉信号确实传递到了视觉皮层。
但疗效的局限性同样明显。ChrimsonR 表达仅限于中央凹周围神经节细胞环,这是由于 AAV2.7m8 通过内界膜的穿透特征决定的;光传感器呈环状组织,排除了高分辨率视觉。使用单一光传感器意味着颜色视觉无法恢复。AAV 转导后,所有类型神经节细胞可能具有相同活动模式,而自然视觉中 ON、OFF、持续和瞬态细胞各司其职。神经节细胞被 AAV 直接激活,人类视网膜的自然信号处理预计不会发生。参与者均为终末期患者,剩余神经节细胞数量相对较少。这些因素共同决定了当前疗法只能提供辅助视觉,而非高锐度视力。
产业格局与展望
Deisseroth 在 NEJM 社论中提出了光遗传学转化的三条路径:直接路径、间接神经调控路径和间接药物路径。直接路径需要将微生物视蛋白基因引入人体,GS030 即属此类;间接神经调控路径利用光遗传学提供的因果性见解指导脑深部电刺激电极放置,已在癫痫和神经病理性疼痛的个体化治疗中得到支持;间接药物路径则利用光遗传学靶点识别能力指导药物开发,两项分别针对精神分裂症和孤独症症状的 2 期试验已完成,由 MapLight Therapeutics 赞助。
产业层面,光遗传学疗法正加速推进。除 GenSight 的 GS030 外,Nanoscope Therapeutics 的 MCO-010 已提交 BLA 申请。它采用合成的多特征视蛋白,以 AAV2 经视网膜下注射递送、靶向双极细胞,可在普通环境光下工作,无需护目镜。中国管线也在跟进,中眸医疗、星明优健、健达九州等初创企业获资本加持,推动光遗传学疗法在国内的临床转化。
技术迭代方向清晰。Deisseroth 在社论中指出,新近发现的三聚体通道视紫红质具有更高的光敏感性和更强的光电流,可能提升视力恢复的速度和程度。护目镜的优化同样关键:整合眼动追踪器、预处理视觉场景以适配神经节细胞的环状组织、使用全息刺激等策略,有望提高传递到视网膜的视觉信息质量。将 ChrimsonR 表达扩展到中央凹周围环之外,以及改进训练方案以利用皮层可塑性,也是重要的探索方向。
从绿藻感光蛋白的发现,到光遗传学工具的建立,再到 NEJM 发表的 I 期临床数据,光遗传学用二十年走通了「基础发现—工具开发—临床验证」的完整链条。AAV 递送载体是这一链条中承上启下的关键环节——没有高效的基因递送,再精妙的光控蛋白也无法抵达靶细胞。随着载体工程化、新型光敏蛋白和护目镜技术的持续进步,未来 3 至 5 年将是光遗传学疗法转化的关键窗口。对于全球超过 150 万视网膜色素变性患者而言,从「辅助视觉」到「实用视力」的跨越,或许并不遥远。

 ×
 首页

 我要采购
 我要供应
 我要推广
 我要投稿

